超越 CRISPR:重编程人体自带的“基因沉默引擎”,如何开启 RNA 医学的新纪元?
目录
阅读时间:约 8 分钟
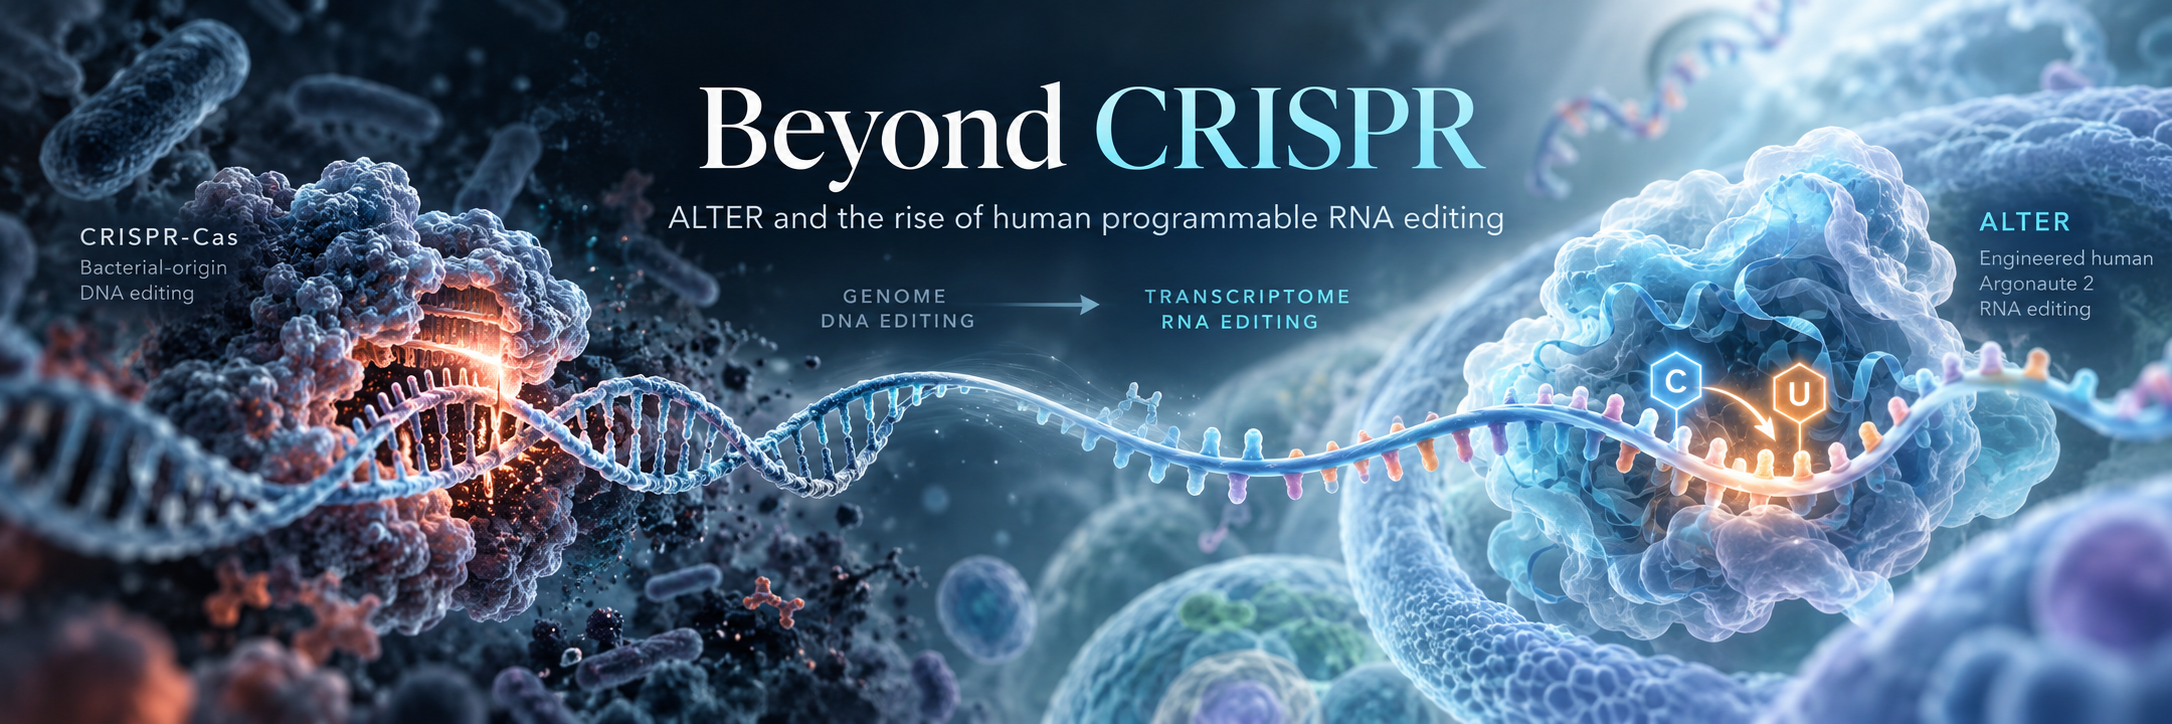
在过去的十几年里,可编程基因医学的叙事几乎被同一个分子家族垄断——CRISPR-Cas 系统。从剪切 DNA 的 Cas9 到靶向 RNA 的 Cas13,这些源自细菌适应性免疫系统的蛋白,赋予了人类在基因组和转录组中精准定位的“分子 GPS”。
然而,当基于 CRISPR 的疗法从实验室培养皿走向人类临床试验时,一个根本性的生物学矛盾日益凸显:人体的免疫系统天生排斥细菌蛋白。
在近期发表于《自然·生物技术》(Nature Biotechnology)的一项重磅研究中(论文题为 “Engineered human Argonaute 2 for targeted C-to-U RNA base editing”,DOI: 10.1038/s41587-026-03359-y),来自斯坦福大学的 Robert F. Lusi、Salvador Moncayo von Hase、Corey Model 和 Steven M. Banik 团队提出了一个极具颠覆性的问题:既然人类细胞的演化已经在我们体内打造出了一台性能卓越的 RNA 寻靶引擎,我们为什么还要费尽周折地从细菌里进口外源机器?
他们给出的答案是 ALTER(AGO-led targeted editing of RNA,AGO 引导的靶向 RNA 编辑系统)——一种完全由改造后的人源蛋白质构建的可编程 C-to-U RNA 碱基编辑器。通过给人类自身的一种核心蛋白赋予全新的功能,ALTER 不仅在编辑效率上大幅超越了细菌 Cas13 系统,还显著降低了脱靶效应,为未来可重复给药、无免疫排斥的 RNA 疗法铺平了道路。
核心痛点:为什么 RNA 医学急需一场“后 CRISPR”升级?
在探讨 ALTER 的未来应用之前,我们先来看看为什么科学界如此看重 RNA 编辑(而非 DNA 编辑),以及现有的技术为什么撞上了天花板。
DNA 碱基编辑是对细胞“底层硬盘”的永久性修改。虽然一劳永逸的修复非常适合某些单基因遗传病,但 DNA 一旦发生脱靶编辑,错误就是不可逆的,且伴随终身的致癌风险。相比之下,RNA 编辑修改的是寿命短暂的 mRNA“临时施工图纸”。由于细胞内的 mRNA 会在几小时或几天内自然降解并重新转录,RNA 编辑是可逆的、暂时的、且剂量可控的。
然而,恰恰是 “RNA 会不断更新(RNA turnover)” 这一特性,给基于细菌 Cas13 的 RNA 编辑器(如 RESCUE 和 CURE)带来了三大临床转化死穴:
- 重复给药的“免疫陷阱”(Immunogenicity): 因为 mRNA 不断代谢更新,慢性病患者必须接受定期、重复的给药。如果反复向人体注射像 Cas13 这样的细菌外源蛋白,人体的适应性免疫系统会被强烈激活,产生中和抗体和细胞毒性 T 细胞反应,不仅会让药物失效,还可能引发严重的免疫毒性。
- 递送载体的体积限制(Delivery Limit): Cas13 蛋白体积庞大,很难连同向导 RNA 一起塞进目前临床最常用的单一腺相关病毒(AAV)载体中(AAV 的装载上限约为 5 kb)。
- 动力学劣势与附带损伤(Suboptimal Kinetics & Off-targets): 细菌 Cas13 并非在哺乳动物细胞环境中演化而来。它在人类细胞内搜索和结合 RNA 的速度、亲和力实际上远不如哺乳动物自带的 RNA 结合蛋白;此外,Cas13 还容易产生非特异性的附带切割(collateral cleavage)以及与宿主调控网络的未知干扰。
破局者 ALTER:劫持人源 Argonaute 2 (AGO2)
事实上,每一个人类细胞里都已经驻扎着一位 RNA 搜寻大师——Argonaute 2 (AGO2),它是人体 RNA 干扰(RNAi)通路的核心催化引擎。当 AGO2 装载上一条仅 21 个核苷酸长的小干扰 RNA(siRNA)或微 RNA(miRNA)后,它能在浩瀚的细胞转录组中高速采样、穿透复杂的 RNA 二级结构,并以极高的速率和亲和力锁定目标 mRNA——其结合动力学表现远超细菌 Cas13。
在自然状态下,当 AGO2 完美匹配目标 mRNA 后,它会像剪刀一样把目标 RNA 切碎,从而使基因沉默。斯坦福团队敏锐地意识到:如果能关掉它的“剪切刀”,就能把人源 AGO2 改造成一个通用的“模块化 RNA 靶向结构域(Modular RNA targeting domain)”。
ALTER 的三大分子工程创新:
- 全人源蛋白融合: 作者将人源 AGO2 与人源胞嘧啶脱氨酶 APOBEC3A (A3A) 融合在一起。A3A 能通过水解脱氨基反应,将单链 RNA 上的胞嘧啶(C)直接改写成尿嘧啶(U)。
- “诱导成环(Loop-Inducing)”向导 RNA 的精妙设计: 天然 AGO2 要切断目标 RNA,向导 RNA 中央区域(第 9–12 位碱基,g9–g12)必须与目标完美配对。研究人员设计了一种特殊的 21-nt 向导 RNA(如
14L8(11,10)):它的两端(5’ 种子区和 3’ 补充区)死死抓牢目标 mRNA,但在正中间故意留出一段不配对的空白,迫使目标 mRNA 在第 11 和 12 位配对碱基之间鼓出一个 14 个核苷酸长的单链 RNA 环(ssRNA loop)。这一招可谓一石二鸟:既彻底废除了 AGO2 的切割降解活性,又把目标C碱基顶到了单链环的暴露位置——而这种茎环结构(stem-loop)恰恰是 A3A 脱氨酶最喜欢催化的天然底物构象! - 理性蛋白质工程与 AI 辅助去免疫原性: 通过系统的突变筛选(构建了 ALTER-1 至 ALTER-5 系列),团队在 AGO2 中引入了
F470V;F505V;Q633R突变(提升靶向信号并大幅压低 P-body 相关的背景噪音),并在 A3A 中引入了K30R;Y132G突变。优化后的 ALTER-4 在内源性 mRNA 靶点上的平均 C-to-U 编辑效率比 Cas13 编辑器(CURE-N 和 RESCUE-S)高出 1.9 倍;在相同编辑效率的剂量下,其全转录组脱靶率降低了 4 到 25 倍。更令人惊叹的是,借助深度学习 MHC-II 抗原呈递预测模型 MARIA,团队发现可以直接删掉两个蛋白之间的人工连接肽(Linker),直接利用 AGO2 自身 N 端前 35 个氨基酸的天然柔性区作为桥梁,并仅通过两个微小的氨基酸替换(M1C和Y2W),就将连接处的预测免疫原性多肽清零!
| 特性 / 指标 | 细菌 Cas13 编辑器 (CURE-N / RESCUE-S) | ALTER 系统 (ALTER-4 / ALTER-5) |
|---|---|---|
| 蛋白来源 | 细菌外源蛋白 (PspCas13b / RanCas13b) | 全人源蛋白 (工程化 AGO2 + APOBEC) |
| 在靶编辑效率 | 基准对照 | 内源 mRNA 靶点 (PPIB, SMARCA4, ACTB, TYMS) 平均高出 1.9 倍;报告基因实验中比 RESCUE-S 高出 3 倍。 |
| 全转录组脱靶数 | 约 1,930–2,050 个脱靶(RESCUE-S 另有 >1,100 个 A-to-I 脱靶) | 518 个脱靶(针对 PPIB,降低 4 倍)。在匹配 Cas13 效率的低剂量下,脱靶数骤降 25 倍(仅 116 个),且无 A-to-I 脱靶问题。 |
| 免疫排斥风险 (MHC-II) | 预测产生约 370–400 个免疫原性多肽 | 经 AI 辅助去免疫原性改造后接近于零。 |
| 临床递送兼容性 | 受限于 Cas13 庞大体积,单载体包装困难 | 成功验证单一 AAV 载体递送及类病毒颗粒 (VLP) 核糖核蛋白 (RNP) 递送。 |
核心展望:ALTER 技术将在哪些未来应用中大放异彩?
虽然目前 ALTER 仍处于人类细胞系(HEK293T)的概念验证阶段,但它的底层架构直接打通了转化医学中最棘手的几个任督二脉。以下是这项技术在未来最具想象力的六大应用方向:
1. 需终身重复给药的慢性遗传病治疗
人类有数以千计的遗传病是由 DNA 上的致病性 T-to-C 点突变引起的(转录成 mRNA 后,原本应该是 U 的位置变成了错误的 C),涵盖遗传性肝代谢疾病、囊性纤维化特定亚型、神经系统离子通道病以及遗传性视网膜病变。
由于 ALTER 完全由人源蛋白组成,且经过了 AI 辅助的去免疫原性改造(Cas13 编辑器被预测会产生约 380–400 个 MHC-II 免疫原性多肽,而去连接肽的 ALTER-4M 几乎为零),人体免疫系统对其产生排斥反应的概率极低。这意味着 RNA 碱基编辑有望像普通抗体药或胰岛素一样实现“慢性、长期重复给药”——在不触碰患者基因组 DNA 安全底线的前提下,持续修正患者体内的致病蛋白。
2. 无缝嫁接成熟的百亿美元级 siRNA 药物管线
ALTER 最具工程实用价值的优势之一,在于它的“导航软件”就是一条标准的 21-nt 小 RNA。在过去二十年里,全球制药工业(如 Alnylam 等核酸药企)已经投入了数百亿美元,把合成 siRNA 的化学修饰工艺(如 2’-O-甲基化、硫代磷酸酯骨架、GalNAc 肝靶向偶联)和体内递送技术打磨得极其成熟。
论文实验证明,ALTER 不仅能使用质粒表达的 shRNA,还能直接装载外源转染的 合成 siRNA 双链(siRNA duplexes) 进行高效编辑。未来的临床场景可能是:先通过一次温和的递送让靶器官(如肝脏或中枢神经系统)表达处于“待机状态”的 ALTER 蛋白底盘,随后医生只需给患者注射化学性质极其稳定的合成小 RNA 药物,就能随时开启编辑、精准调节剂量,甚至通过更换小 RNA 序列来切换治疗靶点。
3. “即用即走”的瞬时疗法(急性损伤、镇痛与组织再生)
在很多医疗场景中,我们绝对不希望永久改变患者的基因——例如:急性心肌梗死或肝损伤后的组织修复、加速伤口愈合、肿瘤免疫治疗中暂时解除免疫检查点抑制,或者通过修改神经元钠离子通道来实现非成瘾性的短期强效镇痛。
论文证实,ALTER 可以被预先组装成核糖核蛋白复合物(RNP),打包进类病毒颗粒(VLP)中递送进细胞。这种瞬时递送模式非常适合“打一枪就走(Hit-and-Run)”的短期干预:比如利用 C-to-U 编辑暂时抹掉某个信号蛋白上的磷酸化位点,或者在致炎因子 mRNA 上人为引入一个临时的提前终止密码子(将 CAA/CAG/CGA 改为 UAA/UAG/UGA),在关键的几天内关闭有害通路,待患者康复后,细胞转录自然恢复如初。
4. 突破序列限制与攻克细胞核内 RNA 疾病
天然的人源 A3A 脱氨酶有着严格的序列偏好性,通常只能编辑前面紧挨着尿嘧啶的胞嘧啶(即 UC 上下文),对 GC 或 AC 位点往往束手无策。
为了打破这一局限,作者开发了 ALTER-5——将 APOBEC1 的脱氨酶结构域嫁接到 A3A 框架中(A3A(ddA1)),成功实现了对内源性 GC 和 AC 靶点的高效编辑。在针对 PPIB 基因 GC 位点的测试中,ALTER-5 的编辑效率远超 Cas13 系统的 RESCUE-S,且完全避免了 RESCUE-S 高达 1,100 多个 A-to-I 脱靶编辑的副作用。此外,通过加上核定位信号(ALTER-4N),该系统还能顺利进入细胞核,精准编辑像 MALAT1 这样的核内长链非编码 RNA(lncRNA),为核内 RNA 聚集疾病和剪接异常疾病打开了大门。
5. 单一 AAV 载体基因治疗与蛋白“瘦身”
临床基因治疗高度依赖 AAV 载体,但传统 Cas13 融合蛋白过大,往往需要拆分成双载体系统,大幅增加了生产成本和临床失败率。作者不仅证明了完整的 ALTER-4 连同向导 RNA 可以轻松装入单个 AAV 载体并高效工作,还通过理性截短开发出了 ALTER-3 (AGO2-deltaPAZ)——直接删掉了 AGO2 中 127 个氨基酸组成的 PAZ 结构域,不仅给蛋白成功“瘦身”,反而让编辑信号翻倍、背景噪音更低。这种紧凑的体积为基因治疗工程师留出了宝贵的载荷空间,以便在单个病毒颗粒中塞入组织特异性启动子或安全调控开关。
6. 万物皆可挂载:构建全人源“表观转录组”乐高平台
这篇论文最深远的意义,莫过于摘要中提出的概念:将人源 AGO2 重编程为一个通用的“模块化 RNA 靶向结构域”。
C-to-U 碱基编辑仅仅是第一个概念验证。既然“诱导成环”向导 RNA 已经把 AGO2 变成了一个只结合、不切割的精准 RNA 导航底座,合成生物学家接下来可以把 APOBEC 脱氨酶卸下来,像拼乐高积木一样换上其他各种人源效应蛋白模块:
- 全人源 A-to-I 碱基编辑器: 挂载人源 ADAR 催化结构域,实现低免疫原性的 A-to-I(腺嘌呤到肌苷)RNA 编辑。
- RNA 表观遗传(m6A)编辑器: 挂载人源甲基转移酶(如 METTL3)或去甲基化酶(如 ALKBH5),在特定 mRNA 上精准写入或擦除 m6A 修饰,调控 mRNA 的稳定性和寿命。
- 可变剪接与翻译增强器: 挂载人源剪接因子,纠正杜氏肌营养不良(DMD)或脊髓性肌萎缩症(SMA)中的外显子跳跃错误;或者挂载翻译起始因子,定向提升单倍体不足(Haploinsufficiency)致病基因的蛋白质产量。
前路与挑战:走向临床还需跨越哪些关卡?
尽管 ALTER 展现出了令人振奋的潜力,但在真正进入人体临床试验之前,仍有几个工程问题有待进一步攻克:
- 基因表达谱扰动(DEGs): 由于 AGO2 本身是人体内源 RNAi 通路的核心枢纽,在细胞内过表达改造后的 AGO2 引起的差异表达基因(DEGs)数量高于外源的细菌 Cas13(不过 GSEA 通路富集分析显示,它并未引起内源 miRNA 调控网络的系统性紊乱)。未来的工程迭代需要进一步寻找能将 ALTER 与细胞内源互作蛋白彻底“绝缘”的突变位点。
- 向导 RNA 设计规则的 AI 化: 实验发现,针对不同的内源基因(如 PPIB 与 TYMS),最优的成环尺寸和错配设计(如
14L8、12L6或14L8(12-13mm))会因目标 RNA 局部二级结构的不同而异。未来需要通过高通量筛选建立大规模数据集,训练机器学习模型来自动预测任意人类基因的最佳成环向导 RNA。
结语
长期以来,合成生物学界习惯于去微生物世界“淘金”,把细菌的武器搬进人体细胞里加以改造。而斯坦福大学团队通过 ALTER 证明了另一条极具美感的路径:当我们深入理解人体自身分子机器的生物物理机制,并将其与理性蛋白质工程、AI 免疫优化相结合时,我们完全可以用人类自己的零件,组装出更安全、更高效、且与生命系统天然兼容的下一代分子药物。
参考文献:
Lusi, R. F., Moncayo von Hase, S., Model, C. & Banik, S. M. Engineered human Argonaute 2 for targeted C-to-U RNA base editing. Nature Biotechnology (2026). https://doi.org/10.1038/s41587-026-03359-y